個別的睡眠必要量の神経生物学的・遺伝学的基盤
天然ショートスリーパー、オレキシン系、そして覚醒と野心を繋ぐ脳の仕組みについて。査読済み文献を元に、分かっていること・研究中のこと・まだ根拠が弱いことを整理する。
( _ _)..zzzZZ
睡眠必要量における著しい個人差、とりわけ健康を損なうことなく短時間の睡眠で自律的に高い活動性を維持する「天然ショートスリーパー」の生理機構は、神経科学および睡眠医学における最重要課題の一つである。本稿では、過眠症の病態生理、オレキシンシステムの発見史と生理機能、天然ショートスリーパーの遺伝的・神経科学的特性、覚醒と動機付けの脳内回路統合、そして高覚醒特性と精神医学的状態の鑑別について、査読済み一次文献に基づき整理する。
過眠症の医学的定義と病態生理
過眠症(Hypersomnia)は、十分な夜間睡眠をとっているに関わらず、日中に制御不能な強い眠気が生じる、あるいは夜間睡眠時間が病的に延長する中枢性疾患群である。単に必要睡眠時間が長い体質(生理的長時間睡眠者)や、睡眠不足による過剰な眠気とは医学的に明確に区別される。
ナルコレプシー1型(NT1)は、視床下部外側野のオレキシン産生神経細胞が自己免疫的機序により特異的に脱落(約80〜100%消失)することで発症し、強烈な日中の眠気と、情動によって全身の筋力が抜ける「情動脱力発作(Cataplexy)」を主徴とする。ナルコレプシー2型(NT2)は情動脱力発作を伴わず、脳脊髄液中のオレキシン濃度も正常範囲に留まる。特発性過眠症(IH)はオレキシン濃度の低下を伴わず、夜間10〜12時間以上眠っても起床時に強い酩酊状態(Sleep Drunkenness)を呈する。
| 区分 | 必須睡眠時間 | 情動脱力発作 | 睡眠慣性 | CSFオレキシン濃度 |
|---|---|---|---|---|
| ナルコレプシー1型 | 正常〜断片化 | あり | 稀 | 著減(≤110 pg/mL) |
| ナルコレプシー2型 | 正常〜やや延長 | なし | 稀 | 正常(>110 pg/mL) |
| 特発性過眠症 | 著増(10〜12h+) | なし | 顕著 | 正常 |
| 生理的ロングスリーパー | 長時間(9〜10h+) | なし | なし(十分な睡眠時) | 正常 |
ロングスリーパーと過眠症患者の根本的な違いは、睡眠の質と日中機能の正常度にある。ロングスリーパーは必要な睡眠が確保されれば日中の覚醒は極めて正常だが、過眠症患者は睡眠時間をどれほど延長しても眠気が解消されない。
柳沢正史教授とオレキシン発見史
1998年、テキサス大学サウスウェスタン医学センターの柳沢正史教授と櫻井武教授らのチームは、機能未知のオーファンGPCRに結合する内因性リガンドの系統的スクリーニングを実施した。ラット脳抽出物から視床下部特異的に発現する新奇の神経ペプチドを発見し、脳室内投与で摂食行動を促進したことから、ギリシャ語で食欲を意味するorexisに因み「オレキシン」と命名した(スタンフォード大学のミノー教授らは同時期に独立して発見し「ヒポクレチン」と命名)。
柳沢らは逆遺伝学的手法でオレキシン前駆体遺伝子ノックアウトマウスを作出し、暗期に突然虚脱して動かなくなる行動を観察、これがヒトのナルコレプシーの情動脱力発作と一致することを発見した。ほぼ同時にミノー教授らが、遺伝性イヌナルコレプシーの原因遺伝子がオレキシン2型受容体の変異であることを突き止め、オレキシン信号系の障害がナルコレプシーの主因であることが確定した。
「柳沢教授自身が過眠症であり、自分の病気を治す為に研究した結果オレキシンを発見した」という説がメディアで見られるが、これは事実と異なる。柳沢教授は自身が過眠症であった事実を明確に否定しており、「毎日7〜8時間の適正な睡眠をとる標準的な睡眠パターンの持ち主」と本人が明言している。オレキシンの発見は、循環器系ペプチド「エンドセリン」の発見で成功を収めた柳沢教授が、オーファンGPCRを用いた創薬アプローチを脳内ペプチドへ応用した基礎生化学的探求の成果であり、個人の病気体験に由来するものではない。
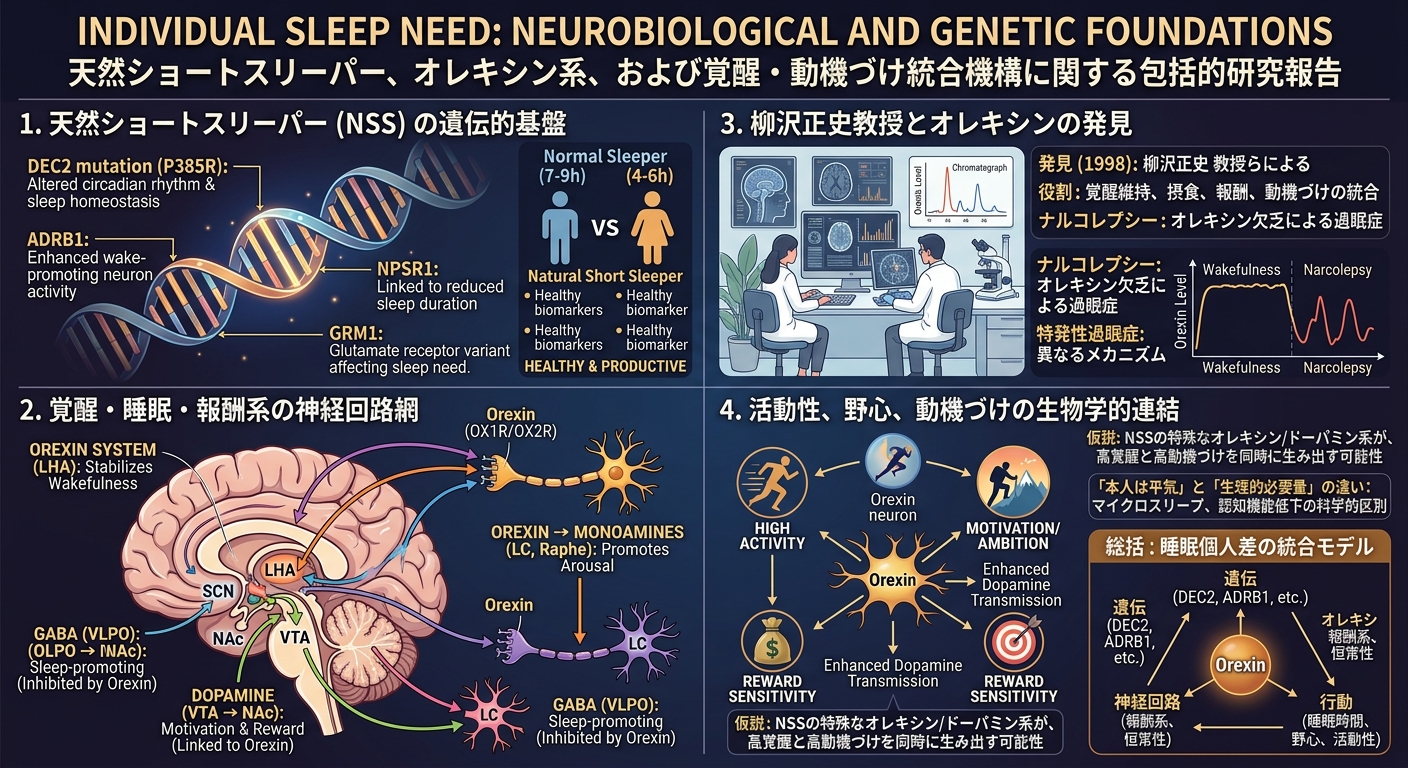
オレキシン産生ニューロンは視床下部外側野に局在し、脳幹のモノアミン系覚醒中枢(青斑核のノルアドレナリン系、結節乳頭核のヒスタミン系、縫線核のセロトニン系)や腹側被蓋野のドーパミン系へ広範に投射する。睡眠と覚醒は、視床下部前野のGABA作動性抑制系と覚醒系が相互抑制する「フリップ・フロップ・スイッチ」構造をとり、オレキシンはこのスイッチが不安定に動揺するのを防ぐスタビライザーとして機能する。更にオレキシンは、報酬系(VTAからのドーパミン放出を増強し目標指向行動を高める)、食欲・エネルギー代謝、ストレス応答・自律神経制御にも関わる、行動プログラム全体の統合システムである。
天然ショートスリーパーの定義
天然ショートスリーパー(Natural Short Sleeper: NSS/家族性天然ショートスリーパー:FNSS)は、「目覚まし時計等の外部的制約なしに、全生涯にわたって毎晩4〜6時間程度の短時間睡眠を維持し、かつ日中の覚醒レベル・認知機能・精神的身体的健康が完全に良好に保たれる個体」と定義される。一般成人の必要睡眠時間が7〜9時間であるのに対し、FNSSは正規分布の極端な左裾に位置する。彼らは慢性睡眠不足者に見られる心血管疾患リスクの上昇、糖代謝異常、免疫機能低下、認知機能減退、アルツハイマー病様アミロイドベータ蓄積等の病理的影響を受けないどころか、特定の変異モデルでは神経変性への耐性や寿命延長効果すら示されている。
休日の「寝だめ」の有無が最も顕著な判別点である。慢性睡眠不足者は休日に睡眠時間が1〜3時間以上延長するが、FNSSは平日・休日を問わず一貫して同一の短時間で自然に覚醒する。日中の注意課題(PVT)でも、睡眠不足者は反応の抜けや遅延を頻発するが、FNSSは極めて高い集中力と安定した反応速度を維持する。ゲノム解析による推定では、真のFNSSの出現頻度は全人口の0.01〜0.1%未満(1万人〜10万人に1人以下)という極めて稀な存在であり、自称ショートスリーパーの大部分は自覚症状が麻痺した慢性睡眠不足者である。
睡眠必要量を制御する遺伝子群
カリフォルニア大学サンフランシスコ校のYing-Hui Fu教授とLouis Ptáček教授らの家系解析研究により、FNSSの原因となる希少遺伝子変異が特定されている。
| 遺伝子 | 報告年 | 本来の機能 | 変異による変化 | 平均睡眠 |
|---|---|---|---|---|
| DEC2 (BHLHE41) | 2009 | 転写抑制因子(時計遺伝子) | オレキシンプロモーターの抑制解除(発現増) | 約6.25時間 |
| ADRB1 | 2019 | β1アドレナリン受容体 | 背側橋のノルアドレナリン覚醒回路の強化 | 約5.7時間 |
| NPSR1 | 2019 | ネロペプチドS受容体 | 受容体の機能獲得(覚醒・抗不安シグナル亢進) | 約5.5時間 |
| GRM1 | 2021 | 代謝型グルタミン酸受容体1 | シナプス恒常性・グルタミン酸伝達の変調 | 約5.0時間 |
DEC2遺伝子の384番目のプロリンがアルギニンに置換された点変異(P384R)は、CLOCK/BMAL1転写促進に対する抑制能を変化させ、オレキシン前駆体プロモーターの抑制を解除してオレキシン発現を増加させる。ヒトで発見されたこれらの変異を導入したノックインマウス・ショウジョウバエでは、いずれも睡眠時間が有意に短縮しながら記憶・学習能力の低下は見られず、変異が単に覚醒を強制するのではなく脳の修復・記憶再構成プロセスそのものを効率化させていることを示唆する。
GWASや双生児研究によると、一般集団における睡眠時間の遺伝率は約20〜40%と推定されている。英国バイオバンク等の大規模ゲノム解析(Kurien et al., 2022)では、前述の単一遺伝子変異を一般集団から偶発的に見出した場合、孤発例では必ずしも強い短時間睡眠フェノタイプを示さない(浸透率が完全ではない)ことが報告された。一般集団の睡眠時間は数百〜数千の微小な効果を持つ共通遺伝子変異の累積によって決まる多遺伝子形質であり、極端なFNSS家系は、多遺伝子背景の上に高浸透率の希少変異が重なることで生じている。
「極端な短時間睡眠」の科学的検証
睡眠ラボで客観的・長期的に測定され、健康に支障がないと科学的に実証された天然ショートスリーパーの睡眠時間は、最長でも4〜6時間程度である。臨床的に「1日数分〜2時間未満の睡眠で長期的に健康を維持出来ている人間」が確認された例は存在しない。
慢性的に睡眠時間を削られた被験者は、数日後に「自分はこの短い睡眠時間に慣れた(平気だ)」と主観的に感じ始める。しかしPVT等で客観的に測定した作業正確性・反応速度・短期記憶能力は日を追う毎に着実に悪化し続ける。前頭前皮質機能が低下することで自らの機能低下を正しく自己評価する能力そのものが麻痺し、「自分は寝なくても平気だ」という主観的誤認が成立する。
起きて活動していると本人が主張している時間帯でも、脳波レベルでは数秒〜数十分間の「マイクロスリープ」が頻発している。高密度EEG研究では、脳全体は覚醒波を示していても前頭葉や視床等特定領域のみが局所的に徐波を呈する「局所睡眠」も確認されている。逆に、本人が「一晩中ほとんど眠れなかった」と訴えていても、PSG検査では正常な徐波睡眠が6〜7時間観察される「睡眠状態誤認」も存在する。真に睡眠が不要な個体と、自覚がないだけの睡眠不足者を科学的に識別するには、高密度終夜睡眠多本図検査、アクチグラフィ、連続体温測定、持続覚醒下PVT、fMRIによる前頭前皮質負荷評価を組み合わせた統合検査が必須となる。
睡眠・覚醒制御の神経回路
睡眠と覚醒の制御は、ボザリーの「2過程モデル」に代表される、サーカディアンリズム(過程C)と睡眠恒常性(過程S)の相互作用によって維持されている。過程Cは視交叉上核の体内時計が駆動する約24時間周期の振幅であり、過程Sは覚醒時間に比例して脳内にアデノシン等の睡眠物質が蓄積し、睡眠圧を高めるプロセスである。
覚醒と睡眠の移行は、オレキシン(覚醒系の安定化)、ドーパミン(覚醒度維持・報酬予測)、ノルアドレナリン(注意集中・緊急時の高覚醒)、ヒスタミン(全皮質への覚醒刺激)、セロトニン(安静覚醒)、アセチルコリン(覚醒・REM睡眠の駆動)、そしてGABA(覚醒中枢を直接抑制し睡眠を導入)という複数の神経伝達物質の調律によって実行される。
①睡眠が必要になる仕組み=シナプス結合の過剰な強化とアデノシンの蓄積。②眠気を感じる仕組み=アデノシンがA1/A2A受容体に結合しVLPOを活性化、前頭葉がそれを認識する(カフェインはこの受容体をブロックし、睡眠要求は維持したまま眠気の感覚だけを遮断する)。③覚醒を維持する仕組み=オレキシンやノルアドレナリン、ドーパミンがVLPOの抑制を押し切り、大脳皮質へ覚醒波を送り続ける駆動機構。この3つは別々のメカニズムである。
睡眠時間と野心・動機付けの関係
遺伝的FNSS変異の保有者には、単に睡眠時間が短いだけでなく「高エネルギー」「楽観的」「野心・タスク遂行志向が強い」「ストレス耐性が高い」といった行動・心理学的傾向が共通して高頻度で見られることが報告されている。
「睡眠時間の短さ」が「野心」を作り出しているのではなく、「特定のアドレナリン系・オレキシン系・ドーパミン系神経回路を強化する遺伝的変異が、覚醒維持能力の向上と報酬追求・動機付け行動の亢進を同時に引き起こしている(遺伝的多面発現:Pleiotropy)」という解釈が最も適合する。オレキシンニューロンはVTAのドーパミン作動性ニューロンへ直接結合しており、オレキシン刺激の強化は覚醒維持と共に新規刺激の探索や目標達成へのモチベーションを増強する。
一般集団を対象としたメガGWASや統計心理学研究では、一般人の「睡眠時間の短さ」と「外向性」「誠実性」「達成動機」との間に強い相関は確認されていない。遺伝的FNSS変異を持たない一般人が睡眠時間を削った場合、前頭葉機能の低下、報酬系不全、衝動性の過度な亢進、動機付けの低下が生じる。「睡眠を削れば野心的になれる」という因果関係は明確に否定される。真のFNSS(全人口の0.1%未満)という限定されたコホートで観察される正の相関は、共通の分子メカニズムが両方の形質を独立に惹起する多面発現であり、直接の因果関係ではない。社会的成功者が自己の能力を強調する為に睡眠時間を過小申告する傾向(生存者バイアス)も、「ショートスリーパー=野心家」というステレオタイプを過剰に膨らませている。
高覚醒体質と精神医学的状態の鑑別
「眠らなくても平気」という臨床像は、必ずしも健康な天然ショートスリーパーを意味しない。精神医学的疾患や過度なストレス、物質使用に伴う過覚醒状態との鑑別が必須である。
| 評価項目 | FNSS | 躁・軽躁状態 | ADHD |
|---|---|---|---|
| 睡眠欲求 | 生涯にわたり短時間で安定 | 「減少」(周期性) | 入眠困難・リズム遅延 |
| 気分の安定性 | 極めて安定・高い耐性 | 高揚・易怒性・激変 | 感情調律の難しさ |
| 思考・認知 | 清明・高い集中力 | 観念奔逸・判断力欠如 | 注意散漫・実行機能障害 |
| 日中の過剰疲労 | なし(客観的にも健全) | なし(後に鬱転) | あり(強い眠気) |
躁病エピソードでは「睡眠欲求の減少」が生じ、患者は睡眠不要を主張し活動し続けるが、観念奔逸や衝動的リスク行動を伴い、エピソード終息後は激しい抑うつや過眠へ移行する点が、生涯一貫しているFNSSと根本的に異なる。ストレス等でHPA軸が過剰駆動しコルチゾールが恒常的に高値となる状態や、カフェイン・精神刺激薬の摂取は、脳の疲労・睡眠圧を一時的に遮断しているだけであり、長期的には心血管系や免疫系への深刻なダメージをもたらす。
家族・遺伝的背景の解析手法
ある家系内に複数の短時間睡眠者が存在する場合、その遺伝構造を解明する為に三つのアプローチが用いられる。家系研究は顕性遺伝形式をとる短時間睡眠の解析に適しており、DEC2・ADRB1・NPSR1・GRM1等の希少な単一遺伝子変異の特定に成功している。双生児研究は一卵性・二卵性双生児の睡眠パターンを比較し、遺伝と環境の寄与率を分離する(睡眠時間・睡眠構造・chronotypeの遺伝率は20〜40%)。全ゲノム関連解析(GWAS)は共通一塩基多型を検索するが、同定される共通変異1個あたりの効果は「数秒〜数分程度」と極めて微小である。
一般集団における睡眠必要量は数百の遺伝子の微小な組み合わせ(ポリジェニック)で決定されており、特定家系で見られる「4時間睡眠で平気な天然ショートスリーパー」は、特殊な希少変異(メンデル遺伝的変異)による例外的な生物学的フェノタイプであると整理される。
スピリチュアル的解釈との分離
人間社会において、睡眠時間の偏りや夢の体験は古来より宗教的・スピリチュアルな思想と結び付けられて来た。科学的事実と神秘主義的解釈は明確に分離される必要がある。スピリチュアル解釈においては、ショートスリーパーや不眠者は「魂の波動が高い」「次元上昇を果たした」「宇宙エネルギーを取り込んでいる為休養を必要としない」等と象徴化され、更に極端な主張として不食・不眠(ブレサリアン)の言説も存在する。ロングスリーパーは「カルマの浄化作業を行っている」、明晰夢は「幽体離脱や並行世界へのアクセス」と解釈されることもある。
完全な不食・不眠で生命を維持出来る人間は存在しない。厳格な科学的監視(密閉研究室での24時間生体モニタリング)に置かれた不食・不眠主張者は、例外なく秘密裏の摂食・睡眠、または急性脱水・器官不全による中断という結果を迎えている。熱力学第一法則および細胞代謝生理学上、休養とエネルギー補給なしの生命維持は不可能である。ショートスリーパーとロングスリーパーの差は、精神性や魂の格ではなく、オレキシン受容体、アドレナリン受容体、時計遺伝子等の転写・シグナル伝達効率の分子レベルの相違に基づく生理学的現象である。夢もまた、REM睡眠中の大脳皮質のアセチルコリン作動性活性化と、海馬・扁桃体における記憶統合・感情処理プロセスの産物であり、神経回路の物理的特性に由来する。
代表的原著論文の要約
| 論文 | 主著者/年 | 主要発見 |
|---|---|---|
| The transcriptional repressor DEC2 regulates sleep length in mammals | Ying-Hui Fu, 2009, Science | 人類初のFNSS原因遺伝子DEC2(P384R)を同定。点変異がオレキシンプロモーターの抑制を解除し睡眠時間が短縮することを証明 |
| A Mutation in ADRB1 Causes a Natural Short Sleep Phenotype in Humans | Guangsen Shi, 2019, Neuron | β1アドレナリン受容体のA187V変異がFNSSを引き起こすことを発見。背側橋のノルアドレナリン覚醒回路の活性化機序を解明 |
| Mutations in NPSR1 cause a natural short sleep phenotype in humans | Subhabrata Xing, 2019, Sci Transl Med | NPSR1のP206L機能獲得型変異が短時間睡眠をもたらすことを特定。アルツハイマー病理の蓄積抑制効果を報告 |
| Mutations in metabotropic glutamate receptor 1 contribute to natural short sleep in humans | P. Kurien, 2021, Curr Biol | GRM1の変異がFNSSの原因となることを発見。興奮性神経伝達とシナプス睡眠恒常性の調整機序を提示 |
| Evaluating the population penetrance of reported Mendelian sleep variants | P. Kurien, 2022, PLOS Genetics | UK Biobank等19万人規模データを用い、FNSS報告変異の一般集団における浸透率を解析。多遺伝子背景の重要性を提示 |
| Narcolepsy in orexin knockout mice | R. M. Chemelli, 1999, Cell | プレプロオレキシンノックアウトマウスがヒトナルコレプシー様のカタプレキシー行動を呈することを発見 |
| Cumulative sleep deficits, neurobehavioral performance, and sleepiness | H. P. Van Dongen, 2003, Sleep | 慢性睡眠剥奪下で主観的眠気はプラトーに達するが、客観的認知パフォーマンスは直線的に悪化し続ける解離を実証 |
総合評価と最終的な問い
睡眠必要量の個人差は、「睡眠恒常性(シナプス修復・代謝物洗浄)の処理効率」と「覚醒維持システムの推進力」の双方が、ゲノム上の多遺伝子構造および希少変異によって個体毎に異なってセットアップされていることに起因する。効率的な修復機構を持つ個体は、短時間の徐波睡眠で脳の初期化を完了させることが出来る。
「短時間睡眠が野心を生む」という直接的因果関係ではなく、「同一の神経回路(特にオレキシン系・モノアミン系・ドーパミン系)が、覚醒の維持と目標指向的モチベーションの双方を同時に駆動している」という遺伝的多面発現の基盤が存在する。ただしこの生物学的基盤を持つのは真の遺伝的FNSS(全人口の0.1%未満)に限られ、一般人が無理に睡眠を削った場合は逆に行動意欲と認知機能が崩壊する。オレキシンは視床下部からVTAのドーパミン系へ投射することで、覚醒・摂食・代謝・交感神経・報酬動機付けを一元的に統合するマスターレギュレーターであり、高覚醒状態と高モチベーション状態を同時に維持する架け橋としての役割を果たしている。
- オレキシン作動性ニューロンの特異的脱落がナルコレプシー1型の直接的病因である。
- DEC2, ADRB1, NPSR1, GRM1等の単一遺伝子変異は、健康を損なわない天然ショートスリーパー形質を引き起こす。
- 柳沢正史教授は過眠症ではなく、オレキシンの発見は基礎生化学スクリーニングの成果である。
- 主観的感覚が「平気」であっても、睡眠剥奪は前頭葉機能と客観的認知パフォーマンスを直線的に低下させる。
- FNSS変異が神経変性疾患や加齢プロセスに対しどのような分子機構で保護作用を発揮するかの詳細回路。
- オレキシン受容体作動薬の臨床応用による、覚醒・認知・動機付けの人工的制御可能性。
- 一般集団における睡眠必要量の個人差を決定する多遺伝子リスクスコアの全容解明。
- 「1日数分〜2時間程度の睡眠で長期間問題なく健康に生活出来る人間が存在する」という主張。
- 「睡眠時間を無理に削ることで野心的になり、仕事の成功率が高まる」という因果関係。
- 「一般集団における短時間睡眠者の大部分が、単一の『ショートスリーパー遺伝子』を持っている」という説。
結び
天然ショートスリーパーは確かに実在するが、それは全人口の0.1%にも満たない、極めて稀な遺伝的特異例である。多くの人にとって睡眠を削ることは野心の源にはならず、むしろ脳のパフォーマンスを静かに損なっていく。おやすみは、サボりではなく、脳が明日の自分を組み立て直す為の、静かで大切な作業なのかもしれない。
( _ _)..zzzZZ おやすみなさい