色とは何か
物理刺激から神経情報・心理表現への還元不能性と色材物性の解明
色覚・構造色・耐熱性仮説の包括的研究
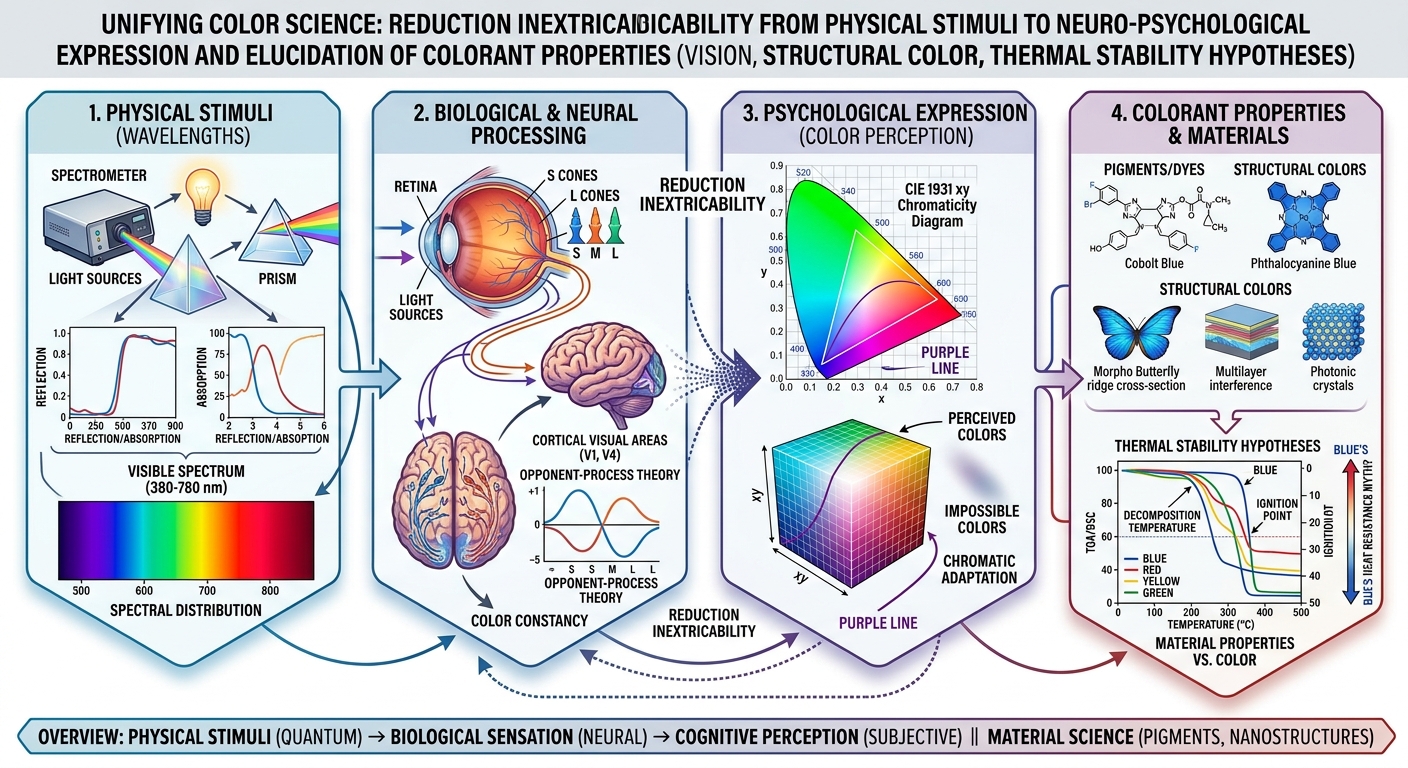
波長は物理量であり、色は知覚である。液体に浸すと消えるモルフォ蝶の青、200 ℃台で崩れる青い顔料、最も熱に強い緑。色と物質の関係を、色覚・構造色・耐熱性の三方向から確かめた。
空気中:キチンとの屈折率差が大きく、青を反射するエタノール中:屈折率差が縮まり、青が失われる
結論
「色」とは、物理世界に独立して存在する客観的物質特性ではなく、光が眼と神経系で処理され、脳の視覚皮質で構成される関係的知覚構造である。
「色」とは、物理世界に独立して存在する客観的物質特性ではなく、「特定波長域の電磁波(光)」という物理的刺激が「眼の光受容体および神経系」によって変換・処理され、「脳の視覚皮質」において構成される関係的知覚構造(Relational Perceptual Construct)である。物理世界に存在するのは電磁波の分光放射輝度分布および物体の分光反射率のみであり、「赤」や「青」といった質的経験(クオリア)は生物の視覚システムの神経処理系に依存して初めて立ち現れる。
また、「青色そのものは燃えにくいのではないか」あるいは「青色を作る物質は他の色より耐熱性が高い」という仮説(仮説A・B・C)は、物質科学および熱力学の観点から完全に反証(棄却)される。代表的な青色物質である無機錯体のプルシアンブルー(紺青)は、空気中 200–270 ℃ という比較的低温で急激な発熱酸化分解を起こし、有毒なシアン化水素ガスを放散する。またインディゴやフタロシアニンブルーといった有機青色色素・顔料も易燃性または熱分解性を示す。一方で、酸化クロム(緑色顔料)の融点は 2435 ℃ に達し、酸化鉄(赤色顔料)も 1500 ℃ 以上の極めて高い熱安定性を誇る。
物質の耐熱性や可燃性は、電子配置、化学結合エネルギー、結晶格子エネルギーによって決まり、可視光域における選択的吸収・反射波長(=色)とは物理的に何の因果関係も持たない。「青=燃えにくい」という直感は、完全燃焼時の高温の青い炎(CH* や C2* ラジカルの発光)に対する心理的誤解や、一部の無機顔料のイメージに由来する認知バイアスに過ぎない。
そもそも色とは何か
「色は物理世界に存在するのか」という問いに科学的に回答するには、物理的刺激、生物学的受容、神経的伝達、主観的知覚の各段階を明確に定義し、それらの概念的境界を区別する必要がある。
物理的要素と神経・心理的要素の厳密な定義
- 光(電磁波)
- 空間を伝播する電磁場の振動であり、真空中の光速 c、周波数 ν、波長 λ(λ = c/ν)で記述される物理量である。可視光線は概ね 380 nm から 780 nm の波長域を指す。
- 波長とスペクトル(分光分布)
- 単一の電磁波の空間的周期(波長)、および光に含まれる各波長成分のエネルギー強度分布 S(λ) を指す。
- 物体の反射・吸収(分光反射率)
- 物体の表面物質が光と相互作用する際、波長ごとに光を反射、透過、または吸収する割合 R(λ) である。
- 網膜・錐体細胞
- 外来の光子(フォトン)を吸収し、網膜の光受容タンパク質(オプシン)の構造変化を通じて膜電位変化(電気信号)に変換する生物学的受容部である。
- 神経信号・脳
- 網膜神経節細胞、視床外側膝状体(LGN)、一次視覚皮質(V1)、高次視覚野(V4/VO)へと伝達・統合されるインパルスのパターンである。
- 色知覚(クオリア)
- 一連の神経情報処理の結果として脳内に生成される、「赤」「青」等の主観的な感覚経験である。
「波長」と「色」の決定的な相違
「650 nm の波長」と「赤」という知覚は等価ではない。波長は 1 次元軸上の連続的な物理的測定値に過ぎないが、色は視覚系内部で定義される多次元の心理的空間(色相、明度、彩度)の属性である。両者の相違を理解する為に、以下の4つの概念を切り分ける。
650 nm の光
単一の物理的波長 λ = 650 nm を持つ電磁波。真空中を約30万 km/s で伝播する場の振動。それ自体に「赤さ」という属性はない。
「赤」という知覚
視覚皮質(V4野等)において生成される主観的クオリア。L錐体の刺激量がM錐体を大幅に上回った際、反対色回路を経て脳内に統合される感覚経験。
赤い物体
照射光のうち 400–550 nm(青〜緑)を吸収し、600–700 nm(赤)を強く反射する分光反射率 R(λ) を持つ物体。物体表面の分子構造や結晶構造によって光の選択的吸収が引き起こされる。
赤い顔料
特定の波長帯を選択的に吸収する化学物質(例:酸化鉄 Fe2O3 やカドミウムレッド CdS1−xSex)。分子内の電子遷移(d-d遷移や π–π* 遷移)により、緑〜青の光子を熱エネルギーに変換・吸収する。
光の波長が同じであっても、周囲の照明光環境や文脈(色恒常性機能)によって知覚される色は変化する。また、分光分布が全く異なる複数の光が同じ色に見える現象(等色現象/メタメリズム)が存在する事実からも、波長と色は物理的・神経科学的に明確に区別される。
人間の色覚
人間の昼間視覚(明所視)は、網膜に存在する3種類の錐体細胞による三色性色覚(Trichromacy)に基づいている。しかし、一般的に語られる「S=青」「M=緑」「L=赤」という単純化された表現は、生理学的な実態を正しく反映していない。
錐体細胞の分光感度特性と一般的な説明の不正確さ
各錐体の吸収スペクトル(Stockman & Sharpe Fundamentals 等)のピーク波長(λmax)は以下の通りである。下のスライダーで波長を動かすと、3種類の錐体がどう応答するかを確かめられる。
▲ 上のグラフの波長に合わせて、枠をクリック/タップして波長を選びます(20 nm刻み)
選択中の波長:
| 錐体種別 | 通称 | ピーク波長(λmax) | 実際の感度帯域 | 感度域の主な特徴 |
|---|---|---|---|---|
| S錐体(Short) | 青錐体 | 約 420–440 nm | 約 380–530 nm | 紫〜青色域にピークを持つ。全錐体の約 5–10% と圧倒的少数派。 |
| M錐体(Medium) | 緑錐体 | 約 530–534 nm | 約 400–650 nm | 黄緑色域にピーク。L錐体と感度曲線が広範囲で重複。 |
| L錐体(Long) | 赤錐体 | 約 560–564 nm | 約 400–700 nm | ピークは「赤」ではなく「黄緑色」に位置する。 |
L錐体のピーク波長は約 560 nm であり、物理的には「緑がかった黄色」の光に対して最も強く応答する。したがって、L錐体単体を「赤錐体」と呼ぶのは生理学的に不正確である。人間が「赤」を感じるのは、L錐体単体の応答ではなく、L錐体の応答がM錐体の応答を著しく上回った際(L − M > 0 の神経比較処理)である。
一価性の原則と組み合わせモデル
単一の錐体細胞は、吸収された光子の波長情報を保持出来ない。これを「一価性の原則(Rushton’s Principle of Univariance)」と呼ぶ。光受容タンパク質(レチナール+オプシン)が光子を吸収して異性化を起こす際、生じる膜電位変化の大きさは「吸収された光子の数」のみに依存し、その光子が 450 nm であろうと 600 nm であろうと、吸収された後の神経応答は区別出来ない。
光子の吸収確率 P(λ) と入射光の強度 I(λ) の積である総吸収量 A が同じであれば、単一の錐体は同じインパルスを出力する為、単一の錐体細胞は本質的に「色盲」である。人間が色を識別出来るのは、感度帯域が異なる3種類の錐体(S, M, L)の応答比率を比較・演算する神経回路(反対色回路)を網膜神経節細胞および脳内に備えているからである。色知覚は、単純な3刺激値の加算ではなく、非線形な対立信号処理(Opponent Processing)の産物である。
紫・マゼンタ・非スペクトル色
単一の波長線からなる光と、複数波長の混合光によって生じる色知覚は物理的に明確に異なる。
スペクトル色と非スペクトル色の物理的・神経的定義
- 単一波長光(単色光)
- 物理的に単一の波長 λ0 のみで構成される光(デルタ関数的な分光スペクトル)。
- 複数波長光(複合光)
- 複数の異なる波長成分が広帯域にわたって混ざり合った光。
- スペクトル色
- 単一波長光によって生じる色知覚。可視光スペクトル上の色(赤、オレンジ、黄、緑、青、スミレ/バイオレット)。
- 非スペクトル色
- 単一波長光のいずれの1波長を網膜に照射しても絶対に生じない色知覚。複数波長光が特定の比率で同時に入射した時のみ脳内に生成される(例:マゼンタ、赤紫/パープル、ピンク等)。
「紫は単一波長では存在しない」説の検証
「紫は単一波長では存在しない」という説は、用語の混同に由来する誤解を含んでいる。
スミレ色(Violet)
単一波長として存在する。短波長(約 400 nm)の単色光はS錐体を強く刺激すると同時に、L錐体の短波長側にある二次的な感度ピーク(オプシンタンパク質の吸収帯特性)をわずかに刺激する為、単一波長であっても青と赤が混ざったような「バイオレット」として知覚される。
マゼンタ/赤紫(Magenta / Purple)
単一波長としては絶対に存在しない。長波長光(赤:約 700 nm)と短波長光(青:約 450 nm)の複合光が同時に網膜に入射し、中波長(緑:約 530 nm)の成分が欠落している場合にのみ脳が形成する非スペクトル色である。
「単一波長の光として存在しないこと(物理的スペクトルの不在)」と「人間の感覚として紫やマゼンタが存在しないこと(心理的経験の不在)」を混同してはならない。マゼンタという知覚体験自体は脳内に明確に存在する実体的な知覚現象である。
CIE 1931 xy 色度図における幾何学的表現と神経機構
CIE 1931 xy 色度図において、単色光の軌跡は馬蹄形の曲線(スペクトル軌跡:Spectral Locus)を描く。380 nm(スミレ色の端)と 700 nm(赤色の端)を結ぶ直線は「純紫線(Purple Line)」と呼ばれ、この直線上に位置する全ての色は単一の波長光では再現出来ない非スペクトル色である。
赤色光(700 nm)と青色光(450 nm)を混合すると、加法混色の原理に従い、色度座標は両点を結ぶ線分上を移動する。この線分は馬蹄形の内部および純紫線近傍を通る為、中波長(緑)のスペクトル軌跡を経由することなく、ダイレクトにマゼンタからパープルへと至る色覚が誘導される。
緑(約 530 nm)の成分が無いまま、赤と青が同時に入る。
網膜からLGN(外側膝状体)にかけての神経回路には、以下の反対色チャネルが存在する。
- 赤-緑チャネル
(L − M) - 正の値で「赤」、負の値で「緑」を可視化。
- 黄-青チャネル
((L + M) − S) - 正の値で「黄」、負の値で「青」を可視化。
赤光と青光が同時に入射すると、S錐体とL錐体が共に強く励起され、M錐体の励起は抑えられた状態になる。これにより、赤-緑チャネルからは「赤(正)」の信号が、黄-青チャネルからは「青(負)」の信号が同時に視覚皮質へ送られる。脳はこの二重の信号入力を「赤かつ青」である統合的知覚、すなわち「マゼンタ/紫」として処理する。
色順応と「超緑」
視覚系は固定的な物理測定器ではなく、環境光線に応じて感度を動的に変化させる「順応(Adaptation)」機構を備えている。
色順応と補色残像の神経メカニズム
強い単色光(例:赤色光)を長時間注視すると、L錐体内の光受容物質(フォトピグメント)が一時的に枯渇・漂白され、L錐体チャネルの感度が低下する(錐体順応)。その状態で等能白色面(全波長が均等に含まれる光)に視線を移すと、不活性化したL錐体に対して順応していないM錐体およびS錐体の応答が相対的に優位となる。この結果、反対色チャネルの平衡が崩れ、物理的には白色光が目に入っているにもかかわらず、赤の補色である「緑」の鮮明な残像(負の残像:Negative Afterimage)が知覚される。
中央の点を、約15秒間見つめ続けます。
中央の点を見つめ続けてください。約15秒で白い面に切り替わります。
白い面に、赤の補色に近い青緑の残像が見えているはずです。点から視線を動かさないでください。
不可能色(Impossible Colors / Forbidden Colors)の研究と批判的検証
反対色説(Opponent-Process Theory)によれば、「赤緑チャネル」は同一の神経経路の励起(赤)と抑制(緑)で表される為、一箇所で「赤色であり同時に緑色である(Reddish-Green)」あるいは「黄色であり同時に青色である(Yellowish-Blue)」という色を知覚することは原理的に不可能(Forbidden)とされる。
しかし、Hewitt D. Crane と Thomas P. Piantanida (1983) は、アイトラッカーを用いて網膜像の固視微動を打ち消し、赤と緑の境界線を網膜上の全く同じ位置に固定化(Retinal Image Stabilization)する実験を行った。その結果、境界の線検出器(エッジ検出器)が疲労して境界が消滅し、被験者は「赤と緑が混ざった見たこともない新しい単一の色(Reddish-Green)」を経験したと報告した。
哲学者 Paul Churchland や心理学者 Vincent A. Billock らは、強烈な色順応と過剰刺激を組み合わせることで、通常の色空間(CIE色度図)の外部に位置するかのような極限の飽和度を持つ非現実的な色知覚を「空想的色彩(Chimerical Colors)」と呼び、以下のように分類した。
超緑
Extraordinary Green / Hyperbolic Green
赤に激しく順応させた後、高純度の緑を注視することで、通常スペクトル光の最大飽和度を超える強烈な緑。
スティギアン・ブルー
Stygian Blue
鮮やかな黄色に順応した後、漆黒の空間を見た際に生じる、「黒と同じ暗さでありながら鮮烈な飽和度の青」。
自発光赤
Self-luminous Red
緑に順応した後、純白を見た際に生じる、紙面自体が発光しているかのように見える赤。
しかし、Po-Jang Hsieh と Peter U. Tse (2006) は、アイトラッカーを用いた網膜像固定実験を再追試・詳細分析した。その結果、境界線が消失した際に観察者が報告した色の多くは、反対色チャネルの制限を突破した新種の色覚ではなく、脳の補完(Filling-in)メカニズムによって生じた中間色(茶色や灰色)や、網膜のテクスチャ上の不均一な混合(赤と緑の微小パッチの混在)であったと結論付けた。観察者が適切な色語(Vocabulary)を持たなかった為、「赤と緑が同時に見えた」と主観的に表現した可能性が高いと指摘された。
生理学的に見れば、「超緑」や「空想的色彩」は「世界に隠された未知の物理的波長を人間が新たに発見した」のではない。順応によって一方の錐体チャネル(例:L錐体)の感度が極限まで落ちることで、他方の錐体チャネル(M錐体)の単独応答比率が通常光線ではあり得ないレベルまで引き上げられ、通常の網膜刺激では到達出来ない神経活動状態が作られた結果と解釈するのが最も正確である。
動物から見た色
色覚は種ごとに固有であり、「人間の見る色」は生物界の標準ではない。他種の動物の色覚構造を比較することで、色が生物の視覚システムと生態的ニーズとの相互作用で決定されることが理解出来る。
各種動物の色覚システムと比較
| 動物種 | 錐体/視物質の種類 | 受容波長域 | 特徴と生態的意味 |
|---|---|---|---|
| マウス・ネズミ | 2色性(Dichromacy) | UV(約 360 nm)、M(約 508 nm) | 紫外線(UV)が視える。夜行性であり、尿の痕跡(UVを吸収)を視認して行動。 |
| 一般の哺乳類(犬、猫、牛) | 2色性(Dichromacy) | S(青系)、L(赤黄系) | 緑と赤の識別能力が低い。夜間感度(桿体細胞)を優先した網膜構造。 |
| ミツバチ | 3色性(Trichromacy) | UV(約 340 nm)、青(約 440 nm)、緑(約 530 nm) | 赤が見えない代わりに紫外線が見える。花弁の「蜜標(Guides)」パターンを認識。 |
| 鳥類(ハト、クジャク等) | 4色性(Tetrachromacy) | UV/スミレ、青、緑、赤 + 油滴 | 4種の錐体に加え、錐体内にカラフルな「油滴(Oil droplets)」を持ち、分光感度帯域を尖鋭にフィルタリング。 |
| シャコ(Stomatopod) | 12〜16種の色素受容体 | UVから赤外近傍、偏光 | 生物界最多の受容体。脳での複雑な演算を行わず、網膜レベルで高速に波長を直接識別するシステム。 |
生物学的解釈と「色の主観性」に関する飛躍の回避
紫外線領域(例:350 nm)を可視化するミツバチや鳥類は、人間には無地に見える花弁に鮮やかな放射状のパターンを見出している。この事実から、「色は生物の感覚システムとの関係で決まる環世界(Umwelt)の産物である」という視点が導かれる。
ただし、ここから「だから色は完全に主観的な幻影であり、物理的実体と何の関係もない」と結論付けるのは論理的な飛躍である。ミツバチが紫外線領域で捉えている光は、物理的に実在する波長 340 nm の電磁波であり、花弁の表面にある化学物質(フラボノイド等)の吸収・反射という客観的物理現象に基づいている。色覚の多様性は、外部世界の客観的な分光情報を、各生物種が生き残る為にどのようにサンプリングし利用しているかの違い(適応の表れ)を意味している。
色素・顔料・構造色
物質が特定の色を呈する(特定波長の光を強調・放出する)物理的・化学的メカニズムは、大きく以下のように分類される。
| 発色機構 | 光の吸収・反射・放出の主体 | 特定波長が強調されるメカニズム | 具体例 |
|---|---|---|---|
| 色素(Dyes) | 分子構造(発色団:共役二重結合系) | 分子軌道間の電子遷移(π–π* 遷移等)により特定波長を吸収し、残りの波長を透過・散乱。水・有機溶媒に可溶。 | インディゴ、メラニン、アントシアニン |
| 顔料(Pigments) | 結晶格子、無機/有機微粒子 | 結晶場理論(d-d遷移)やバンドギャップ(半導体励起)により特定波長を吸収。媒体に不溶の粉末。 | 酸化鉄(赤)、コバルトブルー、酸化クロム(緑) |
| 構造色(Structural Color) | ナノスケールの周期構造(幾何学的構造) | 光の波長と同程度の構造による干渉・回折・散乱・フォトニック結晶効果。特定波長のみが強め合って反射。 | モルフォ蝶、タマムシ、シャボン玉、真珠 |
| 発光(Luminescence) | 励起状態の原子・分子・ラジカル | 化学反応や熱・電気エネルギーにより励起された電子が基底状態に戻る際、エネルギー差に相当する特定波長を放出。 | 炎のラジカル発光、蛍光、LED、ホタル |
| 非相関散乱(Scattering) | 微粒子、密度揺らぎ(構造の不規則性) | 波長と微粒子のサイズ関係による散乱強度差。レイリー散乱(∝ λ−4)やミー散乱。 | 空の青さ、雲の白さ、タバコの煙 |
モルフォブルー
モルフォ蝶(Morpho peleides / Morpho didius)の翅が放つ強烈な青色は、構造色(Structural Color)の代表例として光学論文で詳細に解明されている。
鱗粉のナノ構造と光学現象
鱗粉の表面には、高さ約 2 μm の微小な縦筋(リッジ)が直線状に並んでいる。このリッジの断面は「杉の木(Christmas tree)」状の棚段構造をしており、キチン質(屈折率 n ≈ 1.56)と空気層(屈折率 n = 1.0)が約 60–80 nm の厚さで交互に数十層積層されている。この棚段の間隔は、青色光の波長(約 450 nm)の光が多層膜干渉を起こした際に位相がピッタリ揃い、反射率が最大(極大値 70–80% 以上)になるよう光学的に最適化されている。
通常のアスペクト比の均一な多層膜では、見る角度を変えると反射波長がシフトする(虹色変化/Iridescence)。しかし、モルフォ蝶のリッジは「高さ位置の微小な不規則性(Jitter)」と「断面の傾斜構造」を持っており、これが格子の回折と散乱を適度に分散させる為、視野角が左右 100 度近くにわたって変化しても一定の鮮明な真青を維持する。
また、キチン構造の底部には黒色のメラニン色素が存在する。干渉しなかった透過光や不規則散乱光をこのメラニンが徹底的に吸収することで、背景ノイズ(白ボケ)を排除し、青の彩度を究極まで高めている。
モルフォブルーは「青い物質」なのか?
モルフォブルーは「青い物質(化学的青色色素)」では絶対にない。モルフォ蝶の翅を屈折率がキチン(n ≈ 1.56)に近い液体(エタノール n ≈ 1.36 やトルエン n ≈ 1.49)に浸すと、キチンと間隙(液体)の屈折率差(Δn)が縮まり、強め合いの干渉条件が崩れる。すると美しい青色は急速に失われ、下地のメラニン色素によるくすんだ濁った茶色(黄褐色)へと変化する。液体が揮発して空気が戻ると、即座に鮮やかな青色が復活する。
したがって、モルフォブルーの物理的実体は「幾何学的構造によって青色光のみを選択的に跳ね返す光学装置」である。
赤い構造色
「自然界にはモルフォ蝶のような強力な光沢を持つ真紅(赤)の構造色が少ない」とされる現象について、物理的・生物学的制約から検証する。
「赤色の構造色」に対する物理的・進化的制約
- 波長と構造周期のサイズ要求
(物理的制約) - 赤色光(波長 λ ≈ 650–700 nm)は、青色光(λ ≈ 450 nm)に比べて波長が約 1.5 倍長い。構造色を作る為の多層膜の厚さ d は波長に比例する為(d ≈ λ / 4n)、赤色構造色を作るにはナノ構造を大きく(厚く)製作する必要がある。
- 不規則性と散乱損失
(光学技術的制約) - ナノ構造のスケールが大きくなると、製造時の微小な構造誤差(乱れ)が光学性能に与えるダメージが大きくなり、コヒーレントな干渉が減衰して不規則なミー散乱・レイリー散乱が優勢になる。レイリー散乱の強度 I は波長の4乗に反比例する(I ∝ λ−4)。したがって、自然界の非相関ナノ構造は原理的に短波長(青)を散乱しやすく、長波長(赤)を散乱しにくい。
- 代謝コストと生物学的選択
(進化的制約) - 生物にとって、高精度な大きいナノ構造を細胞構築するよりも、カロテノイドやプテリジン等の赤色化学色素を食物から摂取・体内合成する方が遺伝的・代謝的コスト(Metabolic Cost)が遥かに低い。
自然界の反証例と結論判定
赤色の構造色は「物理的に不可能」なのではない。実際に、アンナハチドリ(Calypte anna)の喉元の羽毛や、タマムシ(Chrysochroa buqueti)の幾何学的鞘翅には、高密度のメラノソーム多層構造による強烈な真紅の構造色が存在する。
最終的な検証結果として、「赤色構造色が少ない」現象は「物理的不可能性」ではなく、「可能であるが、代謝コストと構造精度の要求が高い為進化例が少ない」に分類される。
可能だが進化例が少ない
紫の構造色
構造色で「紫」を表現する場合、単一波長のスミレ色(バイオレット:約 400 nm)を反射させるか、非スペクトル色のマゼンタ/パープル(赤+青)を同時に反射させるかによって物理機構が異なる。
非スペクトル色の紫(マゼンタ)を構造色で作るには、干渉スペクトルにおいて「青(〜450 nm)と赤(〜650 nm)の2箇所に高い反射ピークを持ち、中間の緑(〜550 nm)を徹底的に透過・吸収させる」という複雑な光学応答が必要になる。
これは単一周期の薄膜構造では不可能であり、異なった2つの周期性を持つ重複ナノ構造(デュアル・バンドギャップ・フォトニック結晶)や、赤色色素(カロテノイド等)と青色構造色を組み合わせたハイブリッド系によって実現される。物理的に極めて高度なナノ構造設計が要求される為、自然界における例は青や緑に比べて非常に稀である。
青色と燃焼
本パートでは、冒頭で提示された「青色そのものは燃えにくいのではないか?」という仮説を科学的に検証する。最も重要な前提は、「色(知覚・視覚特性)」と「その色を作り出している物質(化学組成・結晶構造)」を完全に分離して評価することである。
代表的な青色顔料・染料の化学的・熱特性解析
代表的な青色物質について、化学組成、熱分解温度(TGA/DSC解析データ)、可燃性、熱安定性を調査・比較した。
| 顔料・染料名 | 区分 | 化学組成 | 耐熱性・熱分解温度(Td) | 可燃性・酸化還元挙動 |
|---|---|---|---|---|
| コバルトブルー | 無機顔料 | CoAl2O4(スピネル構造) | 融点 1800 ℃ 以上(極めて高耐熱) | 不燃性。窯焼きセラミック釉薬に使用。 |
| セルリアンブルー | 無機顔料 | Co2SnO4(酸化コバルトスズ) | 1000 ℃ 以上で極めて安定 | 不燃性。耐酸・耐アルカリ性。 |
| ウルトラマリン | 無機顔料 | Na8–10Al6Si6O24S2–4 | 約 350–500 ℃ で熱分解 | 不燃性だが、熱により格子内の S3− ラジカルが脱離・変色。 |
| プルシアンブルー | 無機錯体 | Fe4[Fe(CN)6]3·xH2O | 200–270 ℃ で急激に発熱分解 | 【重要反証】空気中で酸化分解し、有毒なシアン化水素(HCN)ガスを放散。 |
| フタロシアニンブルー | 有機顔料 | CuC32H16N8(銅錯体) | 約 400–500 ℃ まで安定 | 可燃性。高温下で熱分解し酸素と反応して燃焼。 |
| インディゴ | 有機染料 | C16H10N2O2(建染染料) | 約 390 ℃ で分解・昇華 | 可燃性。着火源により容易に燃焼。 |
プルシアンブルー(紺青)は無機化合物でありながら、TGA(熱重量分析)および DTA(差熱分析)において空気中 200–270 ℃ という非常に低温で発熱酸化分解を起こし、有毒なシアン化水素ガスを放散する。これは「青色物質=熱に強い」という仮説を破壊する決定的な反証例である。
他の色(赤・黄・緑・白)の顔料との熱特性比較
青色物質が他の色よりも優位に耐熱性が高いのかを検証する為、他色の代表的顔料と融点・熱分解挙動を比較した。バーは各顔料の実際の色で表示し、白線は分解や酸化の開始温度を示す。
分解開始温度と融点は別の指標であり、厳密な同一基準の比較ではない。それでも、青い顔料が耐熱性で優位に立つという傾向は見られない。
全顔料の中で最も耐熱性・融点が高い物質の一つは「緑色」の酸化クロム(融点 2435 ℃)であり、赤色の酸化鉄(融点 1565 ℃)も極めて強固である。青色顔料が他の色よりも優位に耐熱性が高いという事実は存在しない。
青い炎のメカニズム
ガスコンロやブンゼンバーナーの炎が青く見えるのは、「炎が冷たいから」でも「燃えていないから」でもない。炭化水素燃料が十分な酸素の元で完全燃焼(Complete Combustion)している際、高温状態で生成される自由ラジカル(CH* ラジカルの 431 nm 発光、および C2* ラジカルの Swan バンド 470–515 nm 発光)の化学発光(Chemiluminescence)によるものである。
赤い炎。煤(すす)の黒体放射で赤黄色に光る。
青い炎。CH*・C2* ラジカルの化学発光で青く見える。
不完全燃焼の赤い炎に比べ、完全燃焼の青い炎ははるかに高温である。青い炎はむしろ「きわめて激しく高温で燃焼が完了している状態」を意味しており、青い炎の存在を「青=燃えにくい」と捉えるのは、黒体放射とラジカル発光の物理メカニズムを混同した誤解である。
各仮説の最終判定
「青という色そのものが燃えにくい」
色は主観的知覚(クオリア)であり、質量や結合エネルギー等の物理物性を一切持たない為。
「青色を作る物質には耐熱性の高いものが多い」
プルシアンブルーは 200 ℃超で発熱分解し、有機青色顔料は普通に燃焼する。緑(酸化クロム:融点 2435 ℃)等の方が遥かに耐熱性が高い。
「青色顔料には無機物が多い為、青が燃えにくく見える」
歴史的背景として無機顔料のイメージが強い為。ただし他色にも等しく無機顔料が存在する。
「青い炎等の現象が、青=燃えにくいという印象を作っている」
煤が出ない青い完全燃焼炎が「煙が出ず火が強くない」という心理的認知バイアスを生む為。
「青色と燃焼性には一般的な因果関係がない」
物質の耐熱性は化学結合・結晶格子エネルギーで決まり、可視光の吸収帯(色)とは独立している為。
「色」とは何なのか
全ての調査を経て、最初の問い「色とはそもそも何なのか?」へ戻り、4つの階層に分けてその本質を統合記述する。
4つの階層による色の定義
物理層(Physics)
波長 380–780 nm の電磁波。物質の表面分子やナノ構造によって反射・透過・吸収・散乱された結果としての分光放射輝度エネルギー分布 S(λ)。
生物・神経層(Biology & Neuroscience)
網膜上のオプシンタンパク質による光子の吸収と異性化。S, M, L 錐体からのスカラ出力および網膜・LGN・大脳皮質視覚野における反対色演算処理。
知覚・心理層(Perception & Qualia)
脳の神経ネットワーク全体の活性化パターンとして内部生成される、「赤」「緑」「マゼンタ」等の質的・主観的経験。
生物が作る色(Biological Photonics)
生存適応(求愛、擬態、警告)の為に、化学色素の選択的吸収や構造色の干渉光学を駆使して、特定波長を制御・操作する進化の産物。
最終的結論:色は実体か、幻覚か、あるいはそれ以外か
「色は物理的実体なのか? それとも脳の幻覚なのか?」科学的に最も適切な回答は、次のようなものである。
色は「物理的実体」でも「無根拠な幻覚」でもなく、生物が物理世界と相互作用する為に構築した「関係的・記号的システム(Relational Symbol System)」である。
物理世界に存在するのは波長とエネルギーという無味乾燥な数理データに過ぎない。しかし、生物の眼と脳は、その波長差を「色」という鮮やかなクオリアに変換・符号化することで、瞬時に熟した果実を見付け(赤と緑の識別)、天敵の気配を察知し、求愛相手の健康状態を識別することを可能にした。
哲学的に言えば、色は「世界がそれ自体で持っている客観的属性」ではないが、同時に「脳が勝手に捏造した無意味な錯覚」でもない。物理世界に実在する分光パターンを、生物の神経系というレンズを通して映し出した「意味の翻訳物」こそが、色の真の正体である。
調査の総括
今回わかったこと
- 波長と色は等価ではない:波長は物理的スカラ値であり、色は神経回路による多次元知覚である。波長 650 nm の光と「赤」という知覚は異なる階層に属する。
- 「L錐体=赤錐体」説の誤り:L錐体のピーク波長は約 560 nm(黄緑色)であり、赤を感じるのはL錐体とM錐体の差分演算(L − M)による。
- マゼンタ・赤紫は非スペクトル色である:単一の波長光では絶対に存在せず、長波長(赤)と短波長(青)の複合刺激に対して脳が割り当てる知覚である。
- モルフォ蝶は「青い物質」を含まない:屈折率 1.56 のキチンと空気層のナノ多層膜干渉による構造色であり、溶媒に浸すと青色は消失する。
- 「青は燃えにくい」という仮説は完全に誤り(反証完了):プルシアンブルー顔料は 200–270 ℃ で発熱分解・有毒ガス発生を起こし、有機青色顔料・染料は普通に燃焼する。最高峰の耐熱性を持つ顔料の一つは「緑色」の酸化クロム(融点 2435 ℃)である。
まだ分からないこと
- クオリアのハード・プロブレム(The Hard Problem of Consciousness):V4野等の神経活性化パターン(電気化学的信号)が、どのような物理的メカニズムを経て「赤さ」や「青さ」という主観的な体験(クオリア)へと飛躍・変換されるのかは未解明である。
- 「不可能色」の神経回路的実体:アイトラッカー等で境界を消滅させた際に報告される特殊な色覚が、高次皮質での単なる情報補完(Filling-in)による混乱なのか、真の対立色チャネルの脱抑制による新奇な神経表象なのかは視覚神経科学において未だ議論が続いている。
- シャコの多種類受容体による色処理の全容:人間より遥かに多い12〜16種の色素受容体を持つシャコが、脳内でどのような色空間を構成しているのかの詳細メカニズム。
特に面白かったこと
L錐体のピークは赤ではなく「黄緑色」
人間が赤を感じる為の受容体(L錐体)が、物理的には黄緑色の光(560 nm)に最も強く反応するという事実。
プルシアンブルーの脆弱な耐熱性
熱に強そうな名前と無機構造を持つプルシアンブルーが、わずか 200 ℃超で分解し有毒なシアン化水素ガスを吐き出すという事実。
最強の耐熱顔料が「緑」であること
融点 2435 ℃ を誇り、超高温の耐火レンガや宇宙船のコーティングにも使われる酸化クロム(緑)の圧倒的物性。
単一の錐体細胞は「色盲」である
一価性の原則により、錐体1個は波長と光量の区別が付かず、比較相手がいて初めて色が生まれるという生理学的ロジック。
アルコールをかけると消えるモルフォ蝶の青
物質として青いのではなく、空気とキチンの隙間の屈折率差だけであの鮮烈な青が成立しているという物理的真実。
「青い炎」は冷たいどころか超高温
黒体放射(煤の赤黄色)ではなく、ラジカル発光(CH/C2)による青色が極度の高熱を意味するという逆転。
引用・参考
- Blue Morpho Butterfly(Butterfly and Tea)https://butterflyandtea.com/blue-morpho-butterfly/
- Thermal Decomposition Behavior of Prussian Blue in Various Conditions(ResearchGate)https://www.researchgate.net/publication/349718151_Thermal_Decomposition_Behavior_of_Prussian_Blue_in_Various_Conditions
- Materials 2021, 14(5), 1151(MDPI)https://www.mdpi.com/1996-1944/14/5/1151
- Chromium Oxide Green, Metallurgical Grade, CAS 1308-38-9(Dacheng Pharmaceutical)https://www.dacheng-pharmaceutical.com/products/other/chromium-oxide-green-metallurgical-grade-cas-1308-38-9.html
- Application and Core Advantage Analysis of Chromium Oxide Green in Refractory Materialshttps://www.chromeoxidegreen.com/application-and-core-advantage-analysis-of-chromium-oxide-green-in-refractory-materials/
- Colorimetry(Brainard & Stockman、University of Pennsylvania)https://color2.psych.upenn.edu/brainard/papers/Brainard_Stockman_Colorimetry.pdf
- More than the eye can see(artblot)https://artblot.wordpress.com/2014/04/08/more-than-the-eye-can-see/
- Impossible Colors(Science Notes)https://sciencenotes.org/impossible-colors-work-see/
- Opponent process(WikiDoc)https://www.wikidoc.org/index.php/Opponent_process
- Thomas P. Piantanida(SciSpace)https://scispace.com/authors/thomas-p-piantanida-54ibo9co2d
- These colors are physically impossible(Reddit r/woahdude)https://www.reddit.com/r/woahdude/comments/zec6lf/these_colors_are_physically_impossible_seeing/
- 解説動画(YouTube)https://youtu.be/KQIRuGKV01w?si=IKjF4F-2eh8AxB0Y
- Spectral absorption curves for the two types of cone pigment present in the mouse retina(ResearchGate)https://www.researchgate.net/figure/Spectral-absorption-curves-for-the-two-types-of-cone-pigment-present-in-the-mouse-retina_fig1_6351463
- bioRxiv プレプリント(2023.10.12.562066v1)https://www.biorxiv.org/content/10.1101/2023.10.12.562066v1.full
- On metallic luster and iridescence in animal coloration(ResearchGate)https://www.researchgate.net/publication/374804575_On_metallic_luster_and_iridescence_in_animal_coloration